Diffusion et échanges capillaires
Loi de Fick, pressions de Starling, œdème.
La diffusion
Le flux de diffusion est proportionnel à la surface d'échange et au gradient de concentration, et inversement proportionnel à l'épaisseur de la barrière. C'est la loi de Fick.
La barrière alvéolo-capillaire illustre l'optimisation de ces trois termes : une surface immense, une épaisseur de moins d'un micromètre, et un gradient entretenu par la ventilation d'un côté et la perfusion de l'autre.
L'équilibre de Starling
Au capillaire, deux forces s'opposent. La pression hydrostatique pousse l'eau hors du vaisseau ; la pression oncotique, due aux protéines plasmatiques, la retient.
La résultante fait sortir du liquide au pôle artériolaire et en fait rentrer au pôle veineux. Le surplus est drainé par les lymphatiques.
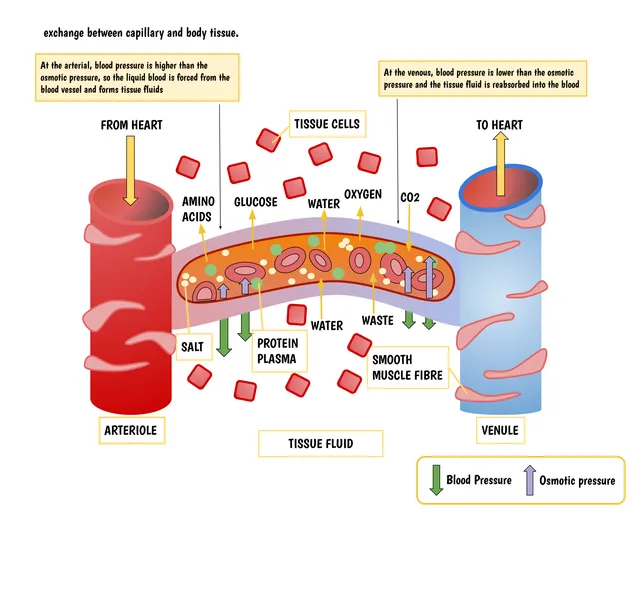

Les forces de Starling au capillaire
Quatre pressions décident du sens des mouvements d'eau à travers la paroi capillaire. La pression hydrostatique capillaire pousse dehors, la pression oncotique plasmatique retient dedans ; leurs équivalents interstitiels agissent en sens inverse et sont plus faibles.
Au pôle artériolaire, la pression hydrostatique l'emporte et il y a filtration. Le long du capillaire elle décroît, si bien qu'au pôle veinulaire la pression oncotique l'emporte et il y a réabsorption. L'excédent non réabsorbé est repris par les lymphatiques. C'est le modèle classique ; on sait aujourd'hui que la réabsorption veinulaire est limitée en régime stable, et que le drainage lymphatique assure une part plus importante du retour de l'eau filtrée.
Un œdème traduit la rupture de cet équilibre, et son mécanisme se déduit du déséquilibre en cause : hydrostatique élevée dans l'insuffisance cardiaque, oncotique effondrée dans le syndrome néphrotique ou l'insuffisance hépatique, perméabilité augmentée dans l'inflammation, drainage interrompu dans le lymphœdème.
La diffusion, rapide sur les courtes distances seulement
La diffusion est le déplacement spontané des molécules d'une zone concentrée vers une zone moins concentrée, dû à leur agitation thermique. Selon la loi de Fick, le flux est proportionnel au coefficient de diffusion, à la surface et à la différence de concentration, et inversement proportionnel à l'épaisseur traversée. Le coefficient de diffusion diminue quand la taille de la molécule augmente et quand la viscosité du milieu augmente.
Le temps nécessaire pour diffuser croît comme le carré de la distance. Une molécule d'oxygène franchit la paroi alvéolaire, épaisse d'un demi-micromètre environ, en une fraction de milliseconde ; elle mettrait quelques secondes pour cent micromètres, mais des heures pour un centimètre.
C'est la raison d'être de la circulation : la diffusion suffit sur les courtes distances, mais pas au-delà. Presque toutes les cellules du corps sont ainsi à moins d'une centaine de micromètres d'un capillaire, et les tissus peu vascularisés, comme le cartilage, restent minces ou vivent à bas régime.
Pression osmotique et tonicité
Quand une membrane laisse passer l'eau mais pas un soluté, l'eau se déplace vers le côté le plus concentré : c'est l'osmose. La pression qu'il faudrait appliquer pour l'arrêter est la pression osmotique ; selon la loi de van 't Hoff, elle est proportionnelle à la concentration totale des particules et à la température absolue. Une différence d'un seul milliosmole par litre correspond à environ 19 mmHg : de faibles écarts de concentration créent des forces considérables.
Ce qui compte, c'est le nombre de particules, non leur masse. Une mole de chlorure de sodium, qui se dissocie en deux ions, compte pour environ deux osmoles ; une mole de glucose pour une seule.
La tonicité décrit l'effet d'une solution sur le volume des cellules. Seuls comptent les solutés qui ne traversent pas la membrane cellulaire. L'urée, qui la traverse librement, augmente l'osmolarité sans changer la tonicité. Plongé dans une solution hypotonique, un globule rouge gonfle et peut éclater : c'est l'hémolyse ; dans une solution hypertonique, il se ratatine. Le sérum salé à 0,9 % est isotonique au plasma.
Les transports membranaires
Les gaz et les petites molécules liposolubles traversent directement la bicouche lipidique : c'est la diffusion simple, dont le flux est proportionnel au gradient sans limite. Les ions et les molécules polaires ont besoin de protéines. Les canaux forment des pores sélectifs, très rapides. Les transporteurs fixent leur soluté et changent de forme pour le faire passer : ils sont plus lents et saturables, avec un débit maximal atteint quand tous sont occupés, comme les transporteurs du glucose.
Ces deux modes, dits passifs, suivent le gradient électrochimique et ne consomment pas d'énergie. Le transport actif primaire va contre le gradient en utilisant directement l'ATP : la pompe sodium-potassium fait sortir trois ions sodium et entrer deux ions potassium par molécule d'ATP. Le transport actif secondaire utilise le gradient de sodium créé par la pompe pour entraîner un autre soluté, dans le même sens, comme le cotransport sodium-glucose de l'intestin et du rein, ou en sens inverse, comme l'échangeur qui fait sortir le calcium du cardiomyocyte.
Les grosses molécules traversent dans des vésicules : endocytose pour entrer, exocytose pour sortir, transcytose pour traverser une cellule de part en part, comme les IgG à travers le placenta.
Trois sortes de capillaires
La paroi capillaire n'est pas partout la même, et sa structure décide de ce qui passe. Les capillaires continus, dont l'endothélium est sans interruption, se trouvent dans les muscles, la peau, les poumons ; l'eau et les petites molécules hydrosolubles passent par les fentes entre les cellules, les protéines presque pas. Dans le cerveau, ces fentes sont fermées par des jonctions serrées : c'est la barrière hémato-encéphalique.
Les capillaires fenêtrés sont percés de petits pores, fermés par un fin diaphragme ou non. On les trouve là où les échanges d'eau et de petites molécules sont intenses : glomérule rénal, villosités intestinales, glandes endocrines, plexus choroïdes.
Les capillaires discontinus, ou sinusoïdes, sont larges, avec de grands espaces entre les cellules et une lame basale incomplète. Ils laissent passer protéines et même cellules : on les trouve dans le foie, qui déverse ses protéines dans le sang, la moelle osseuse, d'où sortent les nouvelles cellules sanguines, et la rate.
Dialyse et ultrafiltration
L'hémodialyse remplace une partie du travail des reins en faisant circuler le sang d'un côté d'une membrane semi-perméable et un liquide, le dialysat, de l'autre, à contre-courant. Les petites molécules — urée, créatinine, potassium — diffusent du sang vers le dialysat, où leur concentration est nulle ou faible ; les cellules et les protéines restent dans le sang. Le dialysat contient du sodium, du bicarbonate et du calcium à des concentrations choisies, pour corriger l'équilibre du patient.
L'eau en excès est retirée par ultrafiltration : une différence de pression appliquée de part et d'autre de la membrane pousse l'eau hors du sang, avec les petits solutés qu'elle entraîne. La diffusion épure surtout les petites molécules ; l'ultrafiltration, par convection, épure mieux les molécules moyennes.
La dialyse péritonéale utilise le péritoine du patient comme membrane : un dialysat est introduit dans l'abdomen, s'y charge des déchets par diffusion, puis est renouvelé. Le glucose qu'il contient, en le rendant hypertonique, attire l'eau du sang par osmose.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- John E. Hall, Michael E. Hall, Guyton et Hall. Physiologie médicale, Elsevier Masson.
En accès libre
- 12.7 Molecular Transport Phenomena: Diffusion, Osmosis, and Related Processes — OpenStax, College Physics 2e.
- 20.3 Capillary Exchange — OpenStax, Anatomy and Physiology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.