Les tissus musculaires
Strié squelettique, strié cardiaque et lisse.
Trois variétés, trois commandes
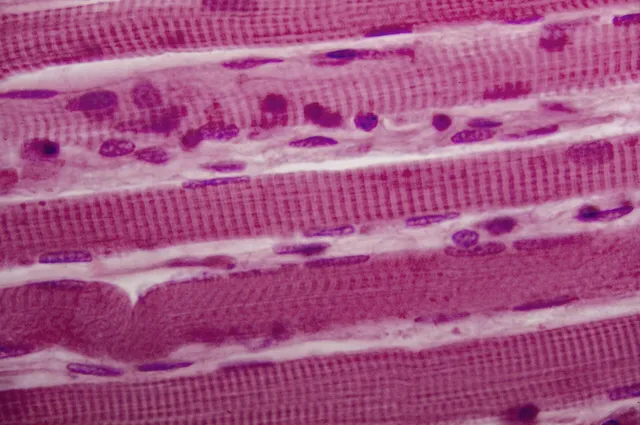
Le muscle strié squelettique est fait de longues fibres plurinucléées, à noyaux périphériques, sous commande volontaire.
Le muscle strié cardiaque est fait de cellules courtes, à un ou deux noyaux centraux, reliées par des disques intercalaires et sous commande involontaire. Son automatisme est intrinsèque.
Le muscle lisse est fait de cellules fusiformes à noyau central unique, dépourvues de striations, sous commande involontaire. On le trouve dans la paroi des vaisseaux et des viscères creux.

Le sarcomère, unité de la contraction
Dans un muscle strié, actine et myosine sont rangées en unités répétitives, les sarcomères, qui s'étendent d'une strie Z à la suivante. C'est cet alignement régulier qui produit la striation visible au microscope.
La bande A, sombre, correspond à la longueur des filaments épais de myosine. La bande I, claire, ne contient que des filaments fins d'actine. Lors de la contraction, les filaments ne se raccourcissent pas : ils glissent les uns sur les autres. La bande A garde donc sa longueur, tandis que la bande I et le sarcomère entier se raccourcissent.
La force développée dépend du nombre de ponts d'union possibles entre myosine et actine, donc du recouvrement entre les deux jeux de filaments. Trop étiré, le sarcomère n'a plus assez de recouvrement ; trop raccourci, les filaments se gênent. Il existe une longueur optimale, et c'est la base mécanique de la loi de Frank-Starling au cœur.
Le muscle lisse, une autre organisation
Le muscle lisse contient les mêmes protéines contractiles, mais disposées obliquement et ancrées sur des corps denses plutôt qu'alignées en sarcomères. D'où l'absence de striation, et une contraction lente mais très économe : il peut maintenir un tonus pendant des heures pour un coût énergétique dérisoire.
Sa commande diffère aussi. Le calcium y agit non par la troponine, absente, mais par la calmoduline, qui active la kinase des chaînes légères de la myosine. Ce mécanisme plus lent explique la latence de la réponse.
Enfin, beaucoup de fibres lisses sont couplées par des jonctions communicantes et se contractent en nappe, avec parfois un automatisme propre — le péristaltisme intestinal persiste sur un segment isolé de toute innervation.
Du muscle à la myofibrille
Un muscle squelettique est emballé à trois niveaux. L'épimysium, conjonctif dense, entoure le muscle entier ; le périmysium découpe des faisceaux de fibres ; l'endomysium, très fin, entoure chaque fibre et porte les capillaires. Ces enveloppes se prolongent dans le tendon et transmettent la force à l'os.
La fibre musculaire est une cellule géante, née de la fusion de nombreux myoblastes, d'où ses centaines de noyaux plaqués sous la membrane. Son cytoplasme est rempli de myofibrilles, cylindres de sarcomères alignés bout à bout, et entouré d'un réticulum sarcoplasmique qui stocke le calcium.
La membrane plonge dans la fibre par des tubules transverses, les tubules T. Chaque tubule T est bordé de deux citernes du réticulum : l'ensemble forme une triade. Quand le potentiel d'action parcourt le tubule, un capteur de voltage de la membrane change de forme et ouvre mécaniquement les canaux calciques du réticulum, les récepteurs de la ryanodine. Le calcium envahit le cytoplasme, se fixe sur la troponine et libère les sites de l'actine.
Types de fibres et recrutement
Toutes les fibres ne se valent pas. Les fibres de type I, lentes, riches en mitochondries, en capillaires et en myoglobine, d'où leur couleur rouge, fonctionnent en aérobie et résistent à la fatigue : elles dominent dans les muscles posturaux. Les fibres de type IIx, rapides, pauvres en mitochondries et riches en glycogène, produisent une force élevée par la glycolyse mais s'épuisent vite. Les fibres IIa sont intermédiaires.
Toutes les fibres d'une même unité motrice sont du même type, car c'est le motoneurone qui impose leurs propriétés. Lors d'un effort croissant, les unités sont recrutées dans un ordre fixe, des plus petites, lentes et résistantes, vers les plus grandes, rapides et puissantes : c'est le principe de la taille. Un geste fin mobilise donc surtout des petites unités, et la force se gradue finement.
L'entraînement modifie les fibres plus qu'il n'en crée. L'endurance accroît mitochondries et capillaires ; la musculation augmente le diamètre des fibres en ajoutant des myofibrilles, avec l'aide des cellules satellites qui fournissent de nouveaux noyaux.
Quand le muscle squelettique est malade
La dystrophie musculaire de Duchenne est due à l'absence de dystrophine, grande protéine qui relie le cytosquelette de la fibre à la matrice extracellulaire. Sans elle, la membrane se déchire à chaque contraction, et les fibres meurent. Le gène est porté par le chromosome X : la maladie touche presque exclusivement les garçons, débute dans l'enfance par des chutes et une difficulté à se relever, et s'accompagne d'une élévation massive des créatine kinases dans le sang.
La myasthénie est une maladie auto-immune de la jonction neuromusculaire : des anticorps bloquent ou détruisent les récepteurs de l'acétylcholine. Le muscle se fatigue anormalement à l'effort répété, typiquement les paupières qui tombent en fin de journée et une vision double. Les médicaments qui inhibent la dégradation de l'acétylcholine l'améliorent.
La rhabdomyolyse est une destruction massive de fibres, après un écrasement, un effort extrême ou certains médicaments. La myoglobine libérée passe dans l'urine, qu'elle colore en brun, et peut boucher les tubules rénaux.
Le cardiomyocyte en détail
Le cardiomyocyte est strié comme la fibre squelettique, mais court, ramifié, avec un ou deux noyaux centraux. Ses disques intercalaires associent trois jonctions : des jonctions adhérentes et des desmosomes, qui transmettent la traction d'une cellule à l'autre, et des jonctions communicantes, qui laissent passer le courant. Le myocarde se comporte ainsi comme un réseau électrique continu.
Son couplage diffère de celui du squelettique. Le potentiel d'action ouvre des canaux calciques de la membrane ; ce petit afflux de calcium extracellulaire déclenche l'ouverture des canaux du réticulum, qui libère le reste. Sans calcium extérieur, le cœur ne se contracte plus, alors que le muscle squelettique continue un moment.
Le cardiomyocyte est l'une des cellules les plus riches en mitochondries, qui occupent environ un tiers de son volume : le cœur ne s'arrête jamais et dépend presque entièrement de l'aérobie. Privé d'oxygène, il meurt en quelques dizaines de minutes et libère ses protéines, dont la troponine cardiaque, dosée dans le sang pour diagnostiquer l'infarctus.
Les visages du muscle lisse
Le muscle lisse se présente sous deux formes. Dans le muscle lisse unitaire, le plus répandu, les cellules sont couplées par des jonctions communicantes et se contractent ensemble : paroi du tube digestif, de l'utérus, de la vessie. Dans le muscle lisse multi-unitaire, chaque cellule est commandée par sa propre terminaison nerveuse, pour des réglages fins : muscles de l'iris, muscles érecteurs des poils.
Sa contraction est lente à s'installer mais peut être maintenue très longtemps avec peu d'ATP, grâce à des ponts qui restent attachés. C'est ce qui permet aux artères de garder un tonus permanent et aux sphincters de rester fermés.
À la différence des cellules musculaires striées, la cellule musculaire lisse peut se diviser. L'utérus pendant la grossesse grossit à la fois par augmentation de la taille de ses cellules et de leur nombre. Proches parents du muscle lisse, les cellules myoépithéliales entourent les acini des glandes et en chassent la sécrétion, et les péricytes entourent les capillaires.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- Alan Stevens, James Lowe, Histologie humaine, Elsevier Masson.
En accès libre
- 4.4 Muscle Tissue and Motion — OpenStax, Anatomy and Physiology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.