Métabolisme énergétique
Glycolyse, cycle de Krebs, chaîne respiratoire et rendements.
Trois étapes en série
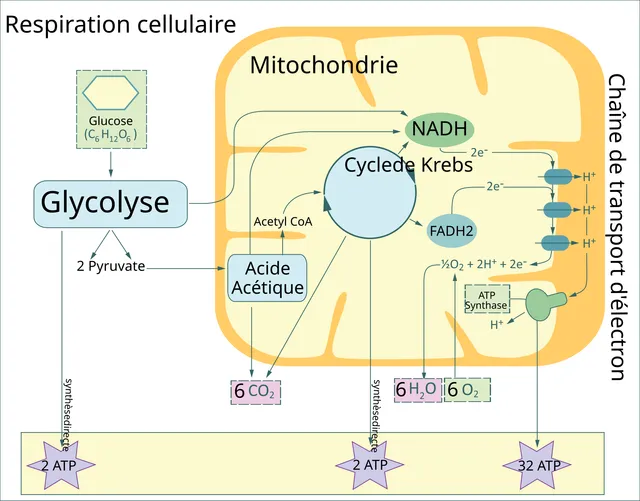
La glycolyse, cytosolique et anaérobie, coupe le glucose en deux pyruvates avec un gain net modeste. Le cycle de Krebs, mitochondrial, achève l'oxydation et produit surtout des coenzymes réduits. La chaîne respiratoire les réoxyde et produit l'essentiel de l'ATP.
L'ATP n'est donc pas fabriqué principalement par les deux premières étapes : leur rôle est de produire du NADH et du FADH₂, monnaie d'échange vers la chaîne respiratoire.

La phosphorylation oxydative
Le transport des électrons le long de la chaîne respiratoire fait sortir des protons de la matrice et crée un gradient à travers la membrane interne. Le retour de ces protons par l'ATP synthase fournit l'énergie de synthèse de l'ATP.
C'est la théorie chimiosmotique : l'énergie n'est pas transmise chimiquement de la chaîne à l'ATP synthase, elle transite par un gradient électrochimique.
Le rendement, en clair
La glycolyse consomme deux ATP et en produit quatre : le gain net est de deux ATP par glucose, plus deux NADH. C'est peu, mais cela fonctionne sans oxygène — d'où sa place chez le globule rouge, dépourvu de mitochondrie, et dans le muscle en effort intense.
L'oxydation complète du pyruvate, en revanche, rapporte l'essentiel. Décarboxylation oxydative puis cycle de Krebs fournissent surtout des coenzymes réduits, dont la réoxydation par la chaîne respiratoire alimente l'ATP synthase. Le total approche une trentaine d'ATP par glucose.
Le facteur quinze entre les deux voies explique l'épuisement rapide d'un effort purement anaérobie, et la place centrale de l'oxygène dans la physiologie de l'exercice.
Nourri, à jeun, à jeun prolongé
Après un repas, l'insuline domine : le glucose entre dans le muscle et l'adipocyte, le foie constitue son glycogène, les acides gras sont stockés.
Quelques heures plus tard, le glucagon prend le relais. Le foie dégrade son glycogène et libère du glucose — le muscle, dépourvu de glucose-6-phosphatase, garde le sien pour lui seul. Cette réserve hépatique s'épuise en un jour environ.
Au-delà, la néoglucogenèse hépatique produit du glucose à partir du lactate, du glycérol et des acides aminés, ces derniers prélevés sur le muscle. Pour limiter cette fonte, le foie convertit les acides gras en corps cétoniques, que le cerveau apprend à utiliser en quelques jours. Cette adaptation économise plusieurs dizaines de grammes de protéines par jour.
La glycolyse et ses points de contrôle
La glycolyse transforme dans le cytosol une molécule de glucose en deux pyruvates, en dix réactions. Elle commence par investir deux ATP pour phosphoryler le glucose puis le fructose-6-phosphate ; elle en récupère ensuite quatre, et produit deux NADH. Elle fonctionne dans toutes les cellules, avec ou sans oxygène.
Trois réactions sont pratiquement irréversibles et servent de points de contrôle : celles de l'hexokinase, de la phosphofructokinase-1 et de la pyruvate kinase. La phosphofructokinase-1 est l'étape limitante : elle est freinée quand la cellule regorge d'énergie — ATP et citrate abondants — et stimulée quand elle en manque — AMP abondant.
Le pyruvate a ensuite deux destins. En présence d'oxygène, il entre dans la mitochondrie, où la pyruvate déshydrogénase le transforme en acétyl-CoA. En l'absence d'oxygène, ou dans le globule rouge qui n'a pas de mitochondrie, il est réduit en lactate : cette réaction régénère le NAD+ sans lequel la glycolyse s'arrêterait.
Le cycle de Krebs et la chaîne respiratoire
Dans la matrice mitochondriale, l'acétyl-CoA se condense avec l'oxaloacétate pour former du citrate, qui parcourt un cycle de réactions et régénère l'oxaloacétate. À chaque tour, deux carbones sont éliminés sous forme de gaz carbonique, et le cycle produit trois NADH, un FADH2 et une molécule de GTP, équivalente à un ATP.
Les coenzymes réduits cèdent leurs électrons à la chaîne respiratoire, une suite de complexes protéiques de la membrane mitochondriale interne. Les électrons y descendent vers l'oxygène, qui les capte en bout de chaîne et forme de l'eau. Ce transport pompe des protons hors de la matrice ; leur retour par l'ATP synthase fournit l'énergie de la synthèse d'ATP.
Le cyanure bloque le dernier complexe de la chaîne : l'oxygène est présent mais inutilisable, et les cellules meurent d'asphyxie malgré un sang bien oxygéné. Les découplants, à l'inverse, laissent les protons revenir sans passer par l'ATP synthase : l'énergie se dissipe en chaleur. C'est le rôle physiologique de la thermogénine du tissu adipeux brun, qui réchauffe le nouveau-né.
Le glycogène, réserve rapide
Le glucose est stocké sous forme de glycogène, polymère ramifié qui peut être construit et dégradé rapidement. Le foie et les muscles en contiennent l'essentiel, mais pour des usages différents. Le foie le libère sous forme de glucose dans le sang, pour maintenir la glycémie ; le muscle, dépourvu de glucose-6-phosphatase, ne peut pas le faire et le consomme pour lui-même.
La synthèse, par la glycogène synthase, est stimulée par l'insuline après les repas. La dégradation, par la glycogène phosphorylase, est stimulée par le glucagon dans le foie et par l'adrénaline dans le foie et le muscle. Les deux enzymes sont réglées en sens opposé par phosphorylation : quand l'une est active, l'autre est freinée.
Les réserves hépatiques s'épuisent en un jour de jeûne environ. Au-delà, la glycémie repose sur la néoglucogenèse, qui produit du glucose à partir de lactate, de glycérol et d'acides aminés.
Les lipides, carburant de réserve
Les triglycérides du tissu adipeux constituent de loin la plus grande réserve d'énergie. En période de jeûne, la lipolyse les découpe en glycérol et acides gras, libérés dans le sang ; l'insuline la freine, les hormones de jeûne la stimulent. Les acides gras entrent dans la mitochondrie grâce à la carnitine et y sont découpés, deux carbones à la fois, en acétyl-CoA : c'est la β-oxydation, très productive en ATP.
Quand l'acétyl-CoA hépatique afflue plus vite que le cycle de Krebs ne peut le traiter, le foie le transforme en corps cétoniques — acétoacétate et β-hydroxybutyrate —, carburant exporté vers le cœur, le muscle et, après quelques jours de jeûne, le cerveau. En l'absence totale d'insuline, dans le diabète de type 1, cette production s'emballe : les corps cétoniques, qui sont des acides, s'accumulent et provoquent une acidocétose.
La synthèse des acides gras, ou lipogenèse, se fait au contraire dans le cytosol, à partir d'acétyl-CoA, quand les apports dépassent les besoins. Elle consomme du NADPH, fourni en grande partie par la voie des pentoses phosphates.
Le devenir des acides aminés
Les acides aminés ne se stockent pas. Ceux qui ne servent pas à construire des protéines perdent d'abord leur groupement amine, transféré à un acide cétonique par les transaminases, puis libéré sous forme d'ammoniac. L'ammoniac, toxique pour le cerveau, est transformé en urée par le foie, et l'urée éliminée par le rein.
Le squelette carboné restant alimente le métabolisme énergétique. La plupart des acides aminés sont glucoformateurs : ils peuvent donner du glucose par la néoglucogenèse, ce qui explique que le jeûne prolongé consomme les protéines musculaires. Quelques-uns, comme la leucine et la lysine, sont exclusivement cétogènes : ils ne donnent que de l'acétyl-CoA ou des corps cétoniques.
Un déficit enzymatique sur l'une de ces voies peut être grave : dans la phénylcétonurie, l'absence d'une enzyme bloque la transformation de la phénylalanine, qui s'accumule et endommage le cerveau en développement. Son dépistage à la naissance permet un régime pauvre en phénylalanine qui prévient ces lésions.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- David L. Nelson, Michael M. Cox, Lehninger. Principes de biochimie.
En accès libre
- 7.4 Oxidative Phosphorylation — OpenStax, Biology 2e.
- 24.2 Carbohydrate Metabolism — OpenStax, Anatomy and Physiology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.