Les protéines : structure et repliement
Acides aminés, quatre niveaux de structure, dénaturation.
Ce qui dirige le repliement
Le repliement est dicté par les chaînes latérales : les résidus hydrophobes s'enfouissent au cœur de la protéine, les résidus polaires restent exposés au solvant. S'y ajoutent ponts salins, liaisons hydrogène et ponts disulfure.
Une élévation de température, un pH extrême ou un agent chaotropique rompent ces interactions faibles : la protéine se dénature et perd sa fonction, sans que sa structure primaire soit touchée.
Quatre niveaux d'organisation
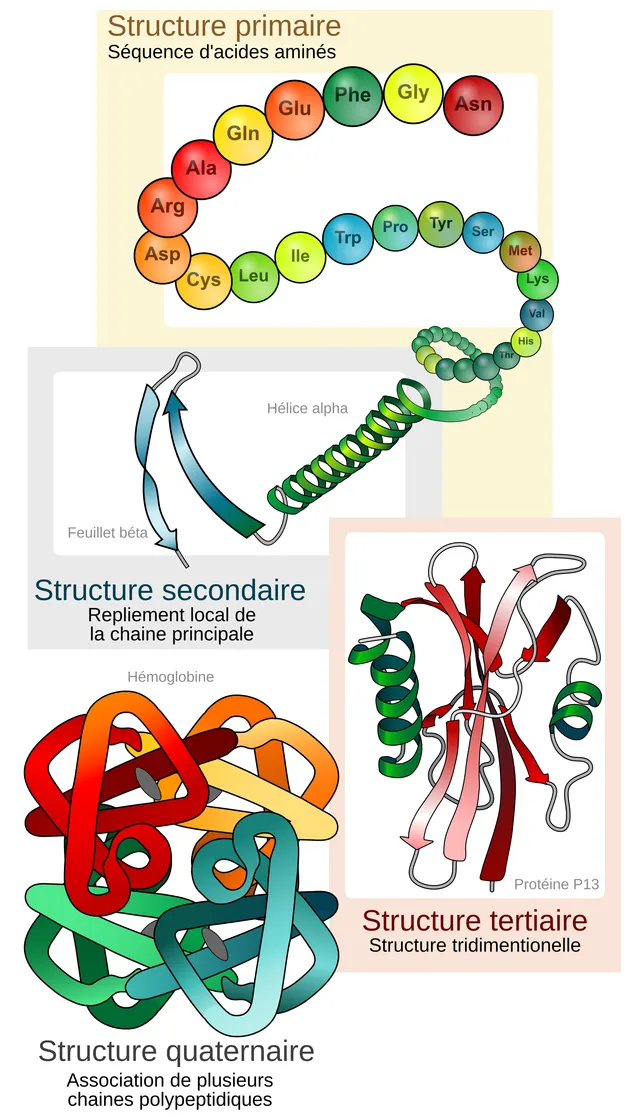
La structure primaire est la séquence des acides aminés, tenue par des liaisons peptidiques covalentes. Elle contient en principe toute l'information nécessaire au repliement : c'est le principe d'Anfinsen.
La structure secondaire décrit les motifs réguliers du squelette peptidique — hélice alpha, feuillet bêta — stabilisés par des liaisons hydrogène entre les groupements C=O et N-H du squelette. Les chaînes latérales n'y participent pas directement, mais elles déterminent la propension d'une séquence à former l'un ou l'autre motif — la proline, par exemple, interrompt les hélices.
La structure tertiaire est le repliement tridimensionnel complet, cette fois gouverné par les chaînes latérales : les résidus hydrophobes s'enfouissent au cœur, les polaires restent exposés, et des ponts disulfure peuvent verrouiller l'ensemble.
La structure quaternaire, enfin, n'existe que pour les protéines à plusieurs chaînes. C'est elle qui rend possible la coopérativité, l'hémoglobine en étant l'exemple canonique.

Quand le repliement échoue
Dans la cellule, une chaîne naissante ne se replie pas toujours seule. Des protéines chaperonnes, dont les protéines de choc thermique, l'empêchent de s'agréger pendant sa synthèse et l'aident à trouver sa conformation ; elles sont surproduites quand la chaleur ou un stress menace de dénaturer les protéines.
Une protéine mal repliée est normalement reconnue, marquée par l'ubiquitine et détruite par le protéasome. Quand ce contrôle est débordé, les protéines anormales s'empilent en fibres insolubles riches en feuillets bêta, les dépôts amyloïdes, qui s'accumulent dans les tissus.
Une seule substitution suffit parfois à changer le comportement d'une protéine. Dans la drépanocytose, la valine qui remplace un acide glutamique crée à la surface de l'hémoglobine désoxygénée une zone hydrophobe : les molécules s'assemblent en longues fibres qui déforment l'hématie en faucille.
Les acides aminés
Les protéines sont construites à partir de vingt acides aminés. Chacun porte, sur un même carbone dit alpha, une fonction amine, une fonction acide carboxylique, un hydrogène et une chaîne latérale qui lui est propre. À pH physiologique, l'amine est protonée et l'acide ionisé : l'acide aminé porte à la fois une charge positive et une charge négative.
On classe les acides aminés selon leur chaîne latérale. Certaines sont apolaires, comme celles de la leucine ou de la valine, et s'enfouissent au cœur des protéines. D'autres sont polaires sans charge, comme la sérine. D'autres encore sont chargées à pH physiologique : négativement pour l'aspartate et le glutamate, positivement pour la lysine et l'arginine ; l'histidine, dont la chaîne a un pKa proche de six, peut capter ou céder un proton selon le milieu.
Neuf acides aminés ne peuvent pas être synthétisés par l'adulte et doivent être apportés par l'alimentation : ce sont les acides aminés indispensables, dont la leucine, la lysine, la méthionine, la phénylalanine et le tryptophane. Une alimentation qui en manque ne permet pas de fabriquer les protéines, quel que soit l'apport en autres acides aminés.
La liaison peptidique
Deux acides aminés s'unissent par une liaison peptidique, formée entre la fonction acide de l'un et la fonction amine de l'autre, avec départ d'une molécule d'eau. Une chaîne d'acides aminés a donc une orientation : elle commence par une extrémité amine libre, dite N-terminale, et se termine par une extrémité acide libre, dite C-terminale. On écrit toujours les séquences dans ce sens, qui est aussi celui de la traduction.
La liaison peptidique a un caractère partiel de double liaison : elle est plane et ne tourne pas. La souplesse de la chaîne vient des deux liaisons qui encadrent chaque carbone alpha, autour desquelles la rotation est possible mais limitée par l'encombrement des chaînes latérales. Ces contraintes expliquent qu'un petit nombre de conformations régulières — hélice, feuillet — se retrouvent dans presque toutes les protéines.
Protéines fibreuses et protéines globulaires
Les protéines fibreuses sont allongées, insolubles et remplissent un rôle mécanique. Le collagène, la protéine la plus abondante du corps, est une triple hélice de chaînes dont un acide aminé sur trois est une glycine, la seule assez petite pour occuper le centre de la torsade. Sa stabilité exige l'hydroxylation de la proline, qui dépend de la vitamine C : sa carence, le scorbut, rend les vaisseaux et les gencives fragiles et empêche la cicatrisation.
La kératine forme les cheveux, les ongles et la couche cornée de la peau ; l'élastine donne aux artères et au poumon leur capacité de retour élastique. Les protéines globulaires, au contraire, sont repliées en pelote compacte et solubles : enzymes, hormones peptidiques, anticorps, transporteurs comme l'hémoglobine et l'albumine.
Myoglobine et hémoglobine
La myoglobine, protéine du muscle, n'a qu'une chaîne et un hème : elle fixe l'oxygène avec une forte affinité, selon une courbe hyperbolique, et sert de réserve qu'elle ne cède que lorsque la pression partielle d'oxygène devient très basse, à l'effort intense.
L'hémoglobine adulte associe quatre chaînes — deux alpha et deux bêta —, chacune avec son hème. La fixation d'une molécule d'oxygène facilite celle des suivantes : c'est la coopérativité, qui donne à la courbe de saturation sa forme sigmoïde. L'hémoglobine se charge presque complètement dans le poumon et se décharge largement dans les tissus, sur une plage de pression étroite.
Plusieurs facteurs diminuent son affinité et favorisent la libération d'oxygène : l'acidité et le gaz carbonique — c'est l'effet Bohr —, la chaleur et le 2,3-diphosphoglycérate. L'hémoglobine fœtale, faite de deux chaînes alpha et deux chaînes gamma, fixe moins ce dernier et a donc une affinité plus grande, ce qui permet au fœtus de capter l'oxygène du sang maternel. Le monoxyde de carbone, lui, se fixe sur l'hème environ deux cents fois plus fortement que l'oxygène.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- David L. Nelson, Michael M. Cox, Lehninger. Principes de biochimie.
En accès libre
- 3.4 Proteins — OpenStax, Biology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.