Anticorps et réponse humorale
Structure des immunoglobulines, isotypes, réponse primaire et secondaire.
Une molécule à deux fonctions
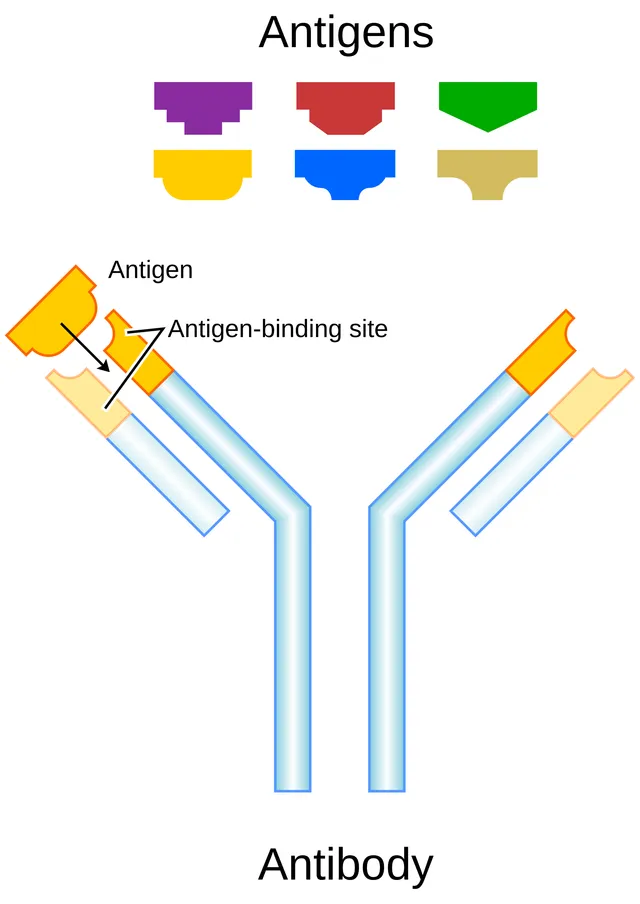
L'immunoglobuline associe deux chaînes lourdes et deux chaînes légères. Ses extrémités variables portent les sites de fixation de l'antigène ; son fragment constant détermine la fonction effectrice — activation du complément, opsonisation, passage placentaire.
Une même spécificité peut donc être portée par des isotypes différents : c'est la commutation de classe, qui adapte la fonction sans changer la cible.

Primaire et secondaire
La réponse primaire est lente, de faible amplitude, et surtout de type IgM. La réponse secondaire, lors d'un second contact, est rapide, intense et dominée par des IgG de bien meilleure affinité.
Cette différence est tout le principe de la vaccination : provoquer une réponse primaire sans maladie, pour que le contact réel déclenche d'emblée une réponse secondaire.
Une même spécificité, cinq fonctions
Un anticorps se divise en deux parties fonctionnelles. Les fragments Fab portent les sites de liaison à l'antigène, engendrés par réarrangement des segments V, D et J. Le fragment Fc, lui, détermine la classe et donc ce que l'anticorps déclenche une fois fixé.
La commutation de classe permet de garder la spécificité en changeant le Fc. Un clone qui produisait des IgM pentamériques peut ainsi passer aux IgG, aux IgA ou aux IgE selon les signaux reçus, sans rien modifier de sa reconnaissance.
Le choix n'est pas anodin. Les IgG traversent le placenta et activent le complément ; les IgA se dimérisent, gagnent les sécrétions et neutralisent sans enflammer ; les IgE se fixent sur les mastocytes et déclenchent la dégranulation.
- IgM : premières produites, pentamériques, forte activation du complément, ne traversent pas le placenta.
- IgG : les plus abondantes, réponse secondaire, traversent le placenta.
- IgA : sécrétions et lait maternel, dimériques dans les sécrétions, protégées par leur pièce sécrétoire.
- IgE : allergie immédiate et défense antiparasitaire, les moins abondantes.
- IgD : surtout membranaires sur le lymphocyte B naïf, rôle encore discuté.
Le centre germinatif, atelier des bons anticorps
Après leur activation, certains lymphocytes B gagnent les follicules des ganglions et y forment des centres germinatifs. Ils s'y multiplient très vite, et une enzyme propre à ces cellules introduit des mutations dans les gènes de leur récepteur : c'est l'hypermutation somatique. La plupart des mutations n'améliorent rien, certaines augmentent l'affinité pour l'antigène.
Les lymphocytes B mutés rivalisent alors pour capter l'antigène et obtenir l'aide des lymphocytes T folliculaires : seuls ceux qui le fixent le mieux survivent. Au fil des semaines, l'affinité moyenne des anticorps augmente : c'est la maturation d'affinité. Dans le même temps, au contact du lymphocyte T par la paire CD40 et son ligand, et sous l'effet des cytokines, le lymphocyte B change de classe d'anticorps, passant de l'IgM à l'IgG, l'IgA ou l'IgE, sans changer de spécificité.
Le centre germinatif produit deux types de cellules durables : des plasmocytes à longue durée de vie, qui s'installent dans la moelle osseuse et sécrètent des anticorps pendant des années, et des lymphocytes B mémoire, prêts à répondre vite à une nouvelle rencontre. Quand le ligand de CD40 manque, maladie liée à l'X, la commutation de classe échoue : le patient a beaucoup d'IgM mais presque pas d'IgG, d'IgA ni d'IgE.
Antigènes avec et sans lymphocytes T
Les antigènes protéiques sont dits thymo-dépendants : la réponse des lymphocytes B exige l'aide de lymphocytes T CD4 qui reconnaissent des peptides de la même protéine. Elle aboutit à des anticorps de haute affinité, de toutes les classes, et à une mémoire.
Les polysaccharides de la capsule de certaines bactéries, faits d'une même unité répétée, peuvent activer directement les lymphocytes B en rapprochant beaucoup de récepteurs à la fois. Ces antigènes thymo-indépendants donnent surtout des IgM, peu de mémoire, et une réponse très faible avant deux ans, âge auquel ce type de réponse est encore immature.
Les vaccins conjugués contournent cette limite : le polysaccharide est accroché à une protéine porteuse. Les lymphocytes B qui reconnaissent le sucre présentent des peptides de la protéine aux lymphocytes T, qui les aident. La réponse devient thymo-dépendante, avec mémoire, et efficace dès les premiers mois. C'est le principe des vaccins contre l'Haemophilus, le pneumocoque et le méningocoque du nourrisson.
Ce que font les anticorps
Un anticorps ne tue rien par lui-même : il marque et bloque. Il neutralise les toxines et les virus en masquant les sites par lesquels ils s'accrochent aux cellules : c'est ainsi que protègent les vaccins contre le tétanos ou la diphtérie. Fixé sur un microbe, il l'opsonise : les phagocytes le reconnaissent par des récepteurs de la partie Fc. Il active la voie classique du complément, l'IgM étant la plus efficace grâce à ses cinq unités. Enfin, les cellules NK tuent les cellules recouvertes d'IgG : c'est la cytotoxicité dépendante des anticorps.
Les IgG sont les plus abondantes dans le sang ; elles ont une demi-vie d'environ trois semaines, prolongée par un récepteur qui les recycle, et ce même récepteur leur fait traverser le placenta. Les IgA sécrétoires protègent les muqueuses et passent dans le lait maternel. Les IgE, très peu abondantes, sont fixées sur les mastocytes, prêtes à déclencher la réaction immédiate.
Les quatre types d'hypersensibilité
L'hypersensibilité de type I, immédiate, est l'allergie : l'allergène se fixe sur les IgE des mastocytes, qui libèrent histamine et médiateurs en quelques minutes. Sa forme généralisée, l'anaphylaxie, associe chute de pression, gonflement et gêne respiratoire ; l'adrénaline injectée dans le muscle en est le traitement d'urgence.
Dans le type II, des anticorps se fixent sur des antigènes de cellules ou de tissus et les détruisent, par le complément ou les phagocytes : c'est le mécanisme de l'accident transfusionnel ABO ou de certaines anémies auto-immunes. Dans le type III, des complexes antigène-anticorps circulants se déposent dans les vaisseaux, les reins ou les articulations et y déclenchent une inflammation : maladie sérique, certaines vascularites, lupus.
Le type IV, retardé, ne fait pas intervenir d'anticorps mais des lymphocytes T. Il se manifeste 48 à 72 heures après le contact : c'est l'eczéma de contact, par exemple au nickel, et la réaction cutanée à la tuberculine, qui témoigne d'une immunité antérieure contre la tuberculose.
Groupes sanguins et transfusion
Les globules rouges portent les antigènes du système ABO : A, B, les deux, ou aucun pour le groupe O. Chaque personne possède naturellement, dès la petite enfance, des anticorps de type IgM contre les antigènes qu'elle n'a pas : une personne du groupe A a des anti-B, une du groupe O des anti-A et des anti-B, une du groupe AB n'en a aucun. Transfuser des globules incompatibles déclenche une destruction brutale des globules transfusés, qui peut être mortelle ; d'où les contrôles au lit du malade.
Pour les globules rouges, le groupe O est donneur universel, puisqu'il ne porte ni A ni B, et le groupe AB receveur universel. Pour le plasma, qui contient les anticorps, c'est l'inverse : le plasma AB, sans anticorps, peut être donné à tous.
Le système Rhésus fonctionne autrement : une personne Rhésus négatif n'a pas d'anticorps anti-D naturels, mais peut en fabriquer, de type IgG, après un contact avec des globules Rhésus positif. Chez une femme Rhésus négatif enceinte d'un enfant Rhésus positif, ce contact survient surtout à l'accouchement ; lors d'une grossesse suivante, les IgG anti-D traversent le placenta et détruisent les globules d'un fœtus Rhésus positif. On le prévient en injectant à la mère des immunoglobulines anti-D après chaque situation à risque, qui éliminent les globules fœtaux avant qu'elle ne s'immunise.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- Kenneth Murphy, Casey Weaver, Janeway. Immunobiologie.
En accès libre
- 21.4 The Adaptive Immune Response: B-lymphocytes and Antibodies — OpenStax, Anatomy and Physiology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.