Potentiel de repos et potentiel d'action
Gradients ioniques, seuil, dépolarisation et propagation.
D'où vient le potentiel de repos
Au repos, la membrane est bien plus perméable au potassium qu'au sodium. Le potassium, abondant à l'intérieur, tend à sortir selon son gradient chimique, mais chaque ion qui part laisse derrière lui une charge négative qui le rappelle. Un équilibre s'établit, autour de moins quatre-vingt-dix millivolts pour le potassium seul.
Le potentiel réel, autour de moins soixante-dix millivolts, est un peu moins négatif parce qu'une petite perméabilité au sodium tire dans l'autre sens. Le potentiel de repos est donc une moyenne pondérée par les perméabilités.
La pompe sodium-potassium n'est pas la source directe de ce potentiel : elle entretient les gradients sur lesquels il repose. Sa contribution électrogène propre, du fait du rapport trois pour deux, ne dépasse pas quelques millivolts.
Le tout ou rien
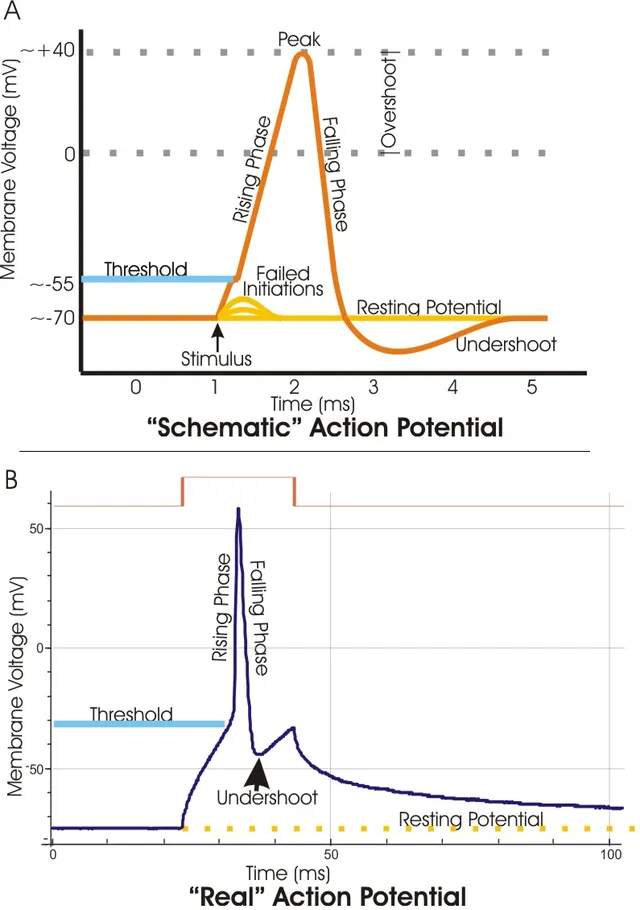
Atteint le seuil, les canaux sodiques voltage-dépendants s'ouvrent massivement et la dépolarisation devient explosive. Leur inactivation, puis l'ouverture retardée des canaux potassiques, ramènent le potentiel à sa valeur de repos.
L'amplitude du potentiel d'action ne dépend pas de l'intensité du stimulus : un stimulus plus fort augmente la fréquence des potentiels, pas leur taille.

La conduction saltatoire
Sur un axone myélinisé, la gaine isole la membrane sauf aux nœuds de Ranvier. Le potentiel d'action ne se régénère qu'à ces nœuds et semble sauter de l'un à l'autre.
Le gain est double : la vitesse augmente considérablement, et la dépense énergétique diminue puisque les flux ioniques ne concernent qu'une fraction de la surface.
Nernst et Goldman
Le potentiel d'équilibre d'un ion est la tension à laquelle la force électrique compense exactement son gradient de concentration : l'ion n'a plus de flux net. L'équation de Nernst le calcule ; à 37 °C, pour un ion monovalent, il vaut environ 61 mV multipliés par le logarithme décimal du rapport des concentrations extérieure et intérieure.
Pour le potassium, 4 mmol/L dehors et 140 dedans, le rapport vaut environ 1/35, dont le logarithme est d'environ −1,5 : le potentiel d'équilibre est d'environ −90 mV. Pour le sodium, 140 dehors et 15 dedans, il est d'environ +60 mV. Pour le chlorure, anion, le signe s'inverse et il se situe autour de −70 mV.
Quand la membrane est perméable à plusieurs ions, le potentiel se place entre leurs potentiels d'équilibre, d'autant plus près de l'un d'eux que la membrane lui est perméable : c'est ce que formalise l'équation de Goldman. Au repos, dominé par le potassium, il est proche de −70 mV ; au pic du potentiel d'action, dominé par le sodium, il se rapproche de +60 mV sans l'atteindre.
Les canaux du potentiel d'action
Le canal sodique voltage-dépendant possède deux portes. La porte d'activation, fermée au repos, s'ouvre très vite quand la membrane se dépolarise jusqu'au seuil, autour de −55 mV. La porte d'inactivation se ferme un peu plus lentement, en moins d'une milliseconde, et bouche le canal même si la dépolarisation persiste. Le canal ne redevient ouvrable qu'après le retour de la membrane vers le repos.
Le canal potassique voltage-dépendant s'ouvre avec retard. Son ouverture fait sortir le potassium et ramène le potentiel vers le repos ; comme il se referme lentement, le potentiel passe brièvement sous la valeur de repos : c'est l'hyperpolarisation consécutive. L'ensemble dure environ une milliseconde dans un neurone.
Les quantités d'ions qui traversent la membrane pendant un potentiel d'action sont infimes par rapport aux stocks : un seul potentiel ne modifie pas les concentrations de façon mesurable. La pompe sodium-potassium n'intervient donc pas dans chaque potentiel d'action, mais sur la durée, pour maintenir les gradients.
Coder une intensité
Le potentiel d'action ayant toujours la même amplitude, l'intensité d'un stimulus est codée autrement. D'abord par la fréquence : un stimulus plus fort ramène plus vite la membrane au seuil après chaque potentiel, pendant la période réfractaire relative, et les potentiels se succèdent plus rapprochés. Ensuite par le recrutement : un stimulus plus fort active davantage de fibres.
La période réfractaire absolue, due à l'inactivation des canaux sodiques, fixe une fréquence maximale, de l'ordre de quelques centaines de potentiels par seconde. Elle impose aussi le sens de propagation : la région qui vient d'être excitée ne peut l'être à nouveau aussitôt, et l'onde ne peut que progresser vers l'avant.
Les fibres nerveuses et leur vitesse
La vitesse de conduction dépend du diamètre de l'axone et de sa myélinisation. Les grosses fibres myélinisées Aα, qui commandent les muscles et véhiculent la proprioception, conduisent à 70 à 120 mètres par seconde. Les fibres Aβ, un peu plus fines, portent le toucher. Les fibres Aδ, fines et peu myélinisées, conduisent à 5 à 30 m/s. Les fibres C, amyéliniques, ne dépassent pas 2 m/s.
Cette différence se ressent lors d'un coup sur le doigt : une première douleur vive et bien localisée, portée par les fibres Aδ, précède de près d'une seconde une douleur sourde et diffuse, portée par les fibres C.
L'électroneuromyogramme mesure la vitesse de conduction des nerfs. Une vitesse très ralentie évoque une atteinte de la myéline ; une amplitude diminuée avec une vitesse conservée évoque une perte d'axones.
Des médicaments et des poisons
La tétrodotoxine, poison du poisson-globe, bouche les canaux sodiques voltage-dépendants : les potentiels d'action ne naissent plus, et la paralysie peut gagner les muscles respiratoires. Les anesthésiques locaux, comme la lidocaïne, bloquent les mêmes canaux, mais de façon réversible et localisée.
Les anesthésiques locaux atteignent plus vite les fibres fines que les grosses : la douleur disparaît d'abord, puis la sensation de température et le toucher, et la motricité en dernier. Ils agissent davantage sur les canaux qui s'ouvrent souvent, donc sur les fibres les plus actives. Ce même principe explique l'emploi de bloqueurs des canaux sodiques contre certaines épilepsies et certains troubles du rythme cardiaque.
Les ions extracellulaires modifient aussi l'excitabilité. Une hyperkaliémie dépolarise la membrane et, prolongée, inactive les canaux sodiques ; une hypokaliémie l'hyperpolarise et donne faiblesse musculaire et troubles du rythme. Une hypocalcémie abaisse le seuil et rend nerfs et muscles hyperexcitables : fourmillements, crampes, voire spasmes, la tétanie.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- John E. Hall, Michael E. Hall, Guyton et Hall. Physiologie médicale, Elsevier Masson.
En accès libre
- 12.4 The Action Potential — OpenStax, Anatomy and Physiology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.