La transmission synaptique
Synapse chimique, neurotransmetteurs, sommation et plaque motrice.
Le relais chimique
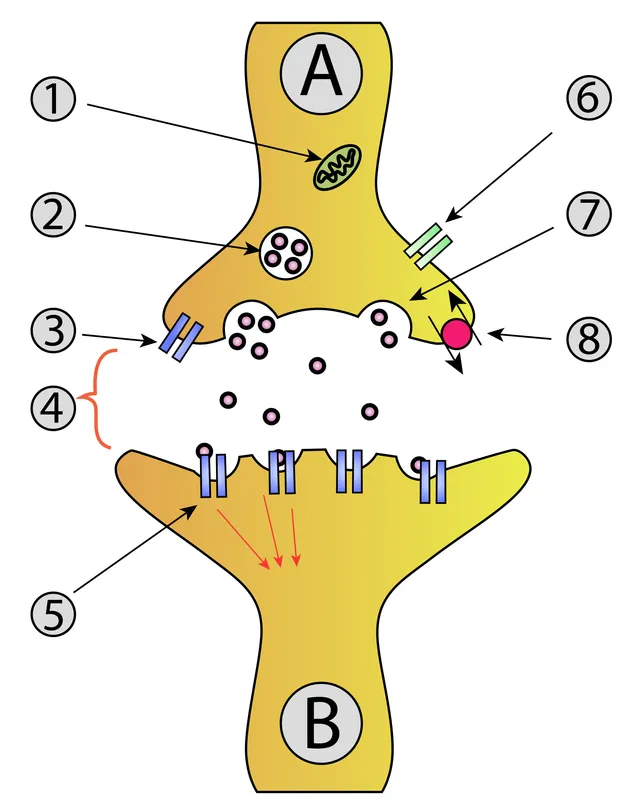
L'arrivée du potentiel d'action à la terminaison ouvre des canaux calciques voltage-dépendants. L'entrée de calcium déclenche la fusion des vésicules et la libération du neurotransmetteur dans la fente.
Le calcium est donc le véritable messager du couplage excitation-sécrétion : sans entrée calcique, pas de libération, quelle que soit la dépolarisation.

Intégration postsynaptique
Le neurotransmetteur engendre un potentiel postsynaptique excitateur ou inhibiteur selon le récepteur — donc selon la cellule cible, non selon le transmetteur lui-même.
Ces potentiels gradués s'additionnent dans le temps et dans l'espace. Le neurone n'émet un potentiel d'action que si leur somme atteint le seuil au segment initial de l'axone : c'est là que se fait la décision.
Le trajet complet d'un signal
Le transmetteur diffuse dans la fente, large d'une vingtaine de nanomètres, et se fixe sur les récepteurs postsynaptiques. S'ils sont ionotropes, le canal s'ouvre aussitôt et l'effet est immédiat mais bref. S'ils sont métabotropes, une cascade intracellulaire s'engage : effet plus lent, plus durable, mais amplifié.
Le signal doit enfin être éteint, faute de quoi le récepteur resterait stimulé en permanence. Trois voies s'en chargent selon le transmetteur : dégradation enzymatique dans la fente, recapture par le neurone ou par l'astrocyte, simple diffusion hors de la fente.
La vie d'une vésicule
Le neurotransmetteur est fabriqué dans la terminaison, ou y arrive par le transport axonal, puis concentré dans des vésicules par un transporteur vésiculaire. Une partie des vésicules est amarrée à la membrane, prête à fusionner, dans des zones actives riches en canaux calciques.
La fusion repose sur des protéines SNARE, portées d'un côté par la vésicule et de l'autre par la membrane, qui s'enroulent les unes autour des autres comme une fermeture éclair. Un capteur de calcium, la synaptotagmine, déclenche la fusion quand le calcium entre : la libération survient moins d'une milliseconde après l'arrivée du potentiel d'action. La membrane de la vésicule est ensuite récupérée par endocytose et recyclée.
Deux toxines bactériennes coupent les protéines SNARE. La toxine botulique agit à la jonction neuromusculaire : l'acétylcholine n'est plus libérée et la paralysie est flasque. Elle est utilisée à très faible dose pour relâcher des muscles trop contractés. La toxine tétanique, elle, migre jusqu'à la moelle et bloque la libération dans les interneurones inhibiteurs : privés de freins, les motoneurones s'emballent et les muscles se contractent en permanence.
Deux familles de récepteurs
Les récepteurs ionotropes sont eux-mêmes des canaux : la fixation du neurotransmetteur ouvre un pore et les ions passent en une fraction de milliseconde. Le récepteur nicotinique de l'acétylcholine, les récepteurs AMPA et NMDA du glutamate et le récepteur GABA-A en font partie. Ils assurent la transmission rapide, point par point.
Les récepteurs métabotropes, couplés aux protéines G, n'ont pas de pore. Ils activent une cascade intracellulaire, par exemple la production d'AMPc, qui modifie des canaux ou l'expression de gènes. Leur effet est plus lent, de quelques dizaines de millisecondes à plusieurs minutes, mais amplifié et diffus. Les récepteurs muscariniques de l'acétylcholine, les récepteurs adrénergiques, dopaminergiques et la plupart des récepteurs de la sérotonine sont métabotropes.
Un même neurotransmetteur peut ainsi avoir des effets opposés selon le récepteur : l'acétylcholine contracte le muscle squelettique par un récepteur nicotinique, mais ralentit le cœur par un récepteur muscarinique.
Arrêter le signal, et comment les médicaments s'en servent
Un signal synaptique n'a de sens que s'il est bref. Trois mécanismes l'arrêtent. L'acétylcholine est dégradée sur place par l'acétylcholinestérase. Les monoamines — dopamine, noradrénaline, sérotonine — sont recaptées par des transporteurs de la terminaison présynaptique. Le glutamate est en grande partie recapté par les astrocytes voisins. Une partie diffuse simplement hors de la fente.
De nombreux médicaments et drogues agissent sur ces étapes. Les antidépresseurs les plus prescrits bloquent la recapture de la sérotonine et prolongent son action. La cocaïne bloque la recapture de la dopamine et de la noradrénaline. Les anticholinestérasiques ralentissent la dégradation de l'acétylcholine : on les utilise dans la myasthénie et dans la maladie d'Alzheimer.
Les insecticides organophosphorés et certains gaz de combat inhibent l'acétylcholinestérase de façon irréversible. L'acétylcholine s'accumule partout : sueurs, salivation, larmoiement, bronches encombrées, diarrhée, pupilles serrées, cœur ralenti, puis paralysie musculaire. L'atropine, qui bloque les récepteurs muscariniques, corrige une partie de ces signes.
Les grands systèmes de neurotransmetteurs
Le glutamate est le principal neurotransmetteur excitateur du système nerveux central ; le GABA en est le principal inhibiteur dans le cerveau, et la glycine dans la moelle. La strychnine, qui bloque les récepteurs de la glycine, provoque des convulsions. Les benzodiazépines renforcent l'effet du GABA sur son récepteur, d'où leur action calmante et anticonvulsivante.
Les monoamines viennent de petits groupes de neurones du tronc cérébral dont les axones se ramifient dans tout le cerveau. Les neurones à dopamine de la substance noire projettent sur le striatum pour le contrôle du mouvement : leur mort cause la maladie de Parkinson. D'autres, de l'aire tegmentale ventrale, participent au circuit de la récompense, cible des drogues addictives. La sérotonine vient des noyaux du raphé, la noradrénaline du locus cœruleus ; toutes deux modulent l'humeur, la vigilance et le sommeil.
L'acétylcholine du système nerveux central, issue notamment d'un noyau de la base du cerveau, participe à l'attention et à la mémoire ; ces neurones dégénèrent tôt dans la maladie d'Alzheimer. Les neuropeptides, comme les endorphines, sont souvent libérés avec un neurotransmetteur classique et modulent son effet.
Le récepteur NMDA, détecteur de coïncidence
Le récepteur NMDA du glutamate a une particularité : au repos, son canal est bouché par un ion magnésium. Il ne s'ouvre que si deux conditions sont réunies en même temps : du glutamate fixé, et une membrane déjà dépolarisée, qui chasse le magnésium. Il détecte donc la coïncidence entre l'activité du neurone présynaptique et celle du neurone postsynaptique.
Ouvert, il laisse entrer du calcium, qui active des enzymes et renforce durablement la synapse, par exemple en ajoutant des récepteurs AMPA : c'est la potentialisation à long terme, étudiée dans l'hippocampe comme base cellulaire de la mémoire.
Le même mécanisme devient toxique lors d'un accident vasculaire cérébral. Privés d'énergie, les neurones libèrent massivement du glutamate que les astrocytes ne recaptent plus ; l'entrée excessive de calcium par les récepteurs NMDA tue les neurones voisins : c'est l'excitotoxicité.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- John E. Hall, Michael E. Hall, Guyton et Hall. Physiologie médicale, Elsevier Masson.
En accès libre
- 12.5 Communication Between Neurons — OpenStax, Anatomy and Physiology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.