Cycle cellulaire et division
Interphase, mitose, points de contrôle et apoptose.
Les quatre phases
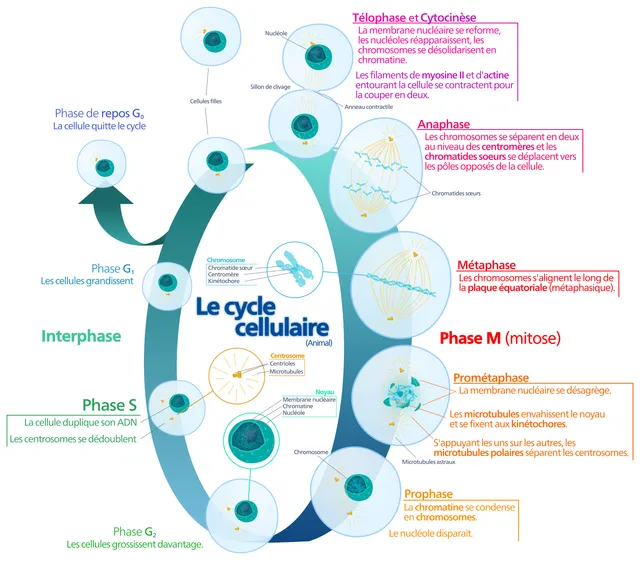
Le cycle alterne une longue interphase et une brève mitose. L'interphase se décompose en G1, croissance ; S, réplication de l'ADN ; G2, préparation à la division.
Une cellule qui cesse de proliférer quitte le cycle en G0. Certaines y restent définitivement — le neurone, le cardiomyocyte ; d'autres peuvent y être rappelées, comme l'hépatocyte après une hépatectomie.

Les points de contrôle
Le cycle est jalonné de points de contrôle qui vérifient que l'étape précédente est achevée et sans erreur. Le contrôle G1/S vérifie l'intégrité de l'ADN avant de le répliquer ; le contrôle G2/M, avant de le séparer ; le contrôle du fuseau vérifie l'attachement de tous les chromosomes.
La protéine p53 est l'acteur central du contrôle G1/S. Elle arrête le cycle le temps de la réparation et, si le dommage est irréparable, déclenche l'apoptose.
Le cycle et ses freins
Le cycle cellulaire avance sous l'impulsion de complexes formés d'une cycline et d'une kinase dépendante des cyclines. La cycline est produite puis détruite à chaque tour, ce qui donne au système son rythme ; la kinase, elle, reste présente mais n'est active que couplée.
Trois points de contrôle vérifient que rien n'est engagé à tort. Celui de G1 examine l'intégrité de l'ADN et la disponibilité des ressources avant d'autoriser la réplication. Celui de G2 vérifie que la réplication est complète et correcte. Celui de la métaphase attend que chaque chromosome soit attaché au fuseau par ses deux kinétochores.
La protéine p53 est le gardien du premier. Devant une lésion de l'ADN, elle bloque le cycle le temps de la réparation ; si le dégât est trop grand, elle déclenche l'apoptose. Son inactivation, présente dans environ la moitié des cancers humains, laisse la cellule se répliquer avec un génome abîmé.
La mitose, étape par étape
En prophase, la chromatine se condense en chromosomes visibles, chacun fait de deux chromatides sœurs unies au centromère ; le nucléole disparaît et les deux centrosomes s'écartent pour organiser le fuseau. En prométaphase, l'enveloppe nucléaire se fragmente et les microtubules du fuseau s'accrochent aux kinétochores, structures protéiques du centromère.
En métaphase, les chromosomes s'alignent sur la plaque équatoriale, chaque chromatide sœur tournée vers un pôle. Tant qu'un seul kinétochore reste libre, le point de contrôle du fuseau bloque la suite. Quand tous sont attachés, un complexe enzymatique déclenche la destruction de la protéine qui retenait l'enzyme de séparation : les cohésines qui unissent les chromatides sœurs sont coupées d'un coup.
En anaphase, les chromatides sœurs se séparent et migrent vers les pôles opposés. En télophase, une enveloppe nucléaire se reforme autour de chaque lot et les chromosomes se décondensent. La cytocinèse, par un anneau contractile d'actine et de myosine, partage enfin le cytoplasme.
Les moteurs du cycle : cyclines et kinases
Le passage d'une phase à l'autre est commandé par des kinases, les CDK, qui ne sont actives qu'associées à une cycline. Les CDK sont présentes en permanence ; ce sont les cyclines, synthétisées puis détruites à des moments précis, qui leur donnent le rythme. Chaque couple cycline-CDK phosphoryle les protéines qui déclenchent l'étape suivante.
En fin de G1, les complexes cycline-CDK phosphorylent la protéine du rétinoblastome, Rb. Non phosphorylée, Rb retient un facteur de transcription indispensable à l'entrée en phase S ; phosphorylée, elle le libère, et la cellule s'engage dans la réplication. C'est le point de restriction, au-delà duquel la cellule n'a plus besoin de facteurs de croissance pour achever son cycle.
Des inhibiteurs de CDK freinent le cycle. L'un d'eux est produit sous l'effet de p53 quand l'ADN est endommagé : la cellule s'arrête le temps de réparer. Des médicaments qui inhibent certaines CDK sont désormais utilisés contre des cancers du sein, pour bloquer la prolifération tumorale en G1.
L'apoptose, une mort programmée
L'apoptose est un suicide cellulaire ordonné, exécuté par des protéases, les caspases. Deux voies y mènent. La voie intrinsèque, ou mitochondriale, répond à un stress interne — ADN endommagé, privation de facteurs de croissance : la membrane externe de la mitochondrie devient perméable, le cytochrome c est libéré et active les caspases. Les protéines de la famille Bcl-2 règlent cette étape, certaines protégeant la cellule, d'autres la poussant à mourir.
La voie extrinsèque répond à un signal venu de l'extérieur : la fixation d'un ligand sur un récepteur de mort, comme Fas, active directement une caspase initiatrice. C'est l'une des armes des lymphocytes T cytotoxiques.
La cellule apoptotique se condense, fragmente son ADN et se découpe en corps apoptotiques entourés de membrane, aussitôt phagocytés : il n'y a ni fuite de contenu ni inflammation. L'apoptose sculpte les organes pendant le développement — elle creuse les espaces entre les doigts — et élimine les lymphocytes autoréactifs. Trop peu d'apoptose favorise les cancers ; trop, les maladies neurodégénératives.
Cycle cellulaire et cancer
Un cancer naît de l'accumulation de mutations dans deux catégories de gènes. Les proto-oncogènes stimulent normalement la prolifération ; une mutation qui les rend hyperactifs en fait des oncogènes, et il suffit qu'un seul des deux allèles soit touché. Les gènes suppresseurs de tumeur, comme RB ou TP53, freinent la prolifération ou déclenchent l'apoptose ; il faut en principe perdre les deux allèles pour que le frein disparaisse.
Le rétinoblastome, tumeur de la rétine de l'enfant, a illustré cette logique. Dans la forme héréditaire, l'enfant naît avec un allèle de RB déjà muté dans toutes ses cellules : il suffit d'une seconde mutation, fréquente, pour qu'une tumeur apparaisse, souvent aux deux yeux et tôt. Dans la forme sporadique, il faut deux mutations dans la même cellule : la tumeur est unique et plus tardive. C'est l'hypothèse des deux coups.
Les cellules normales ont un nombre de divisions limité, parce que leurs télomères raccourcissent à chaque réplication. La plupart des cellules cancéreuses réactivent la télomérase, qui les rallonge, et deviennent capables de se diviser indéfiniment.
Tissus qui se renouvellent, tissus qui ne se renouvellent pas
Les cellules labiles se divisent en permanence : épiderme, épithélium intestinal, moelle osseuse. Ces tissus se régénèrent vite, mais sont aussi les plus touchés par les traitements qui bloquent la division, d'où la chute des cheveux, les ulcérations buccales et la baisse des globules sous chimiothérapie.
Les cellules stables, comme les hépatocytes, sont au repos en G0 mais peuvent reprendre leur cycle quand le tissu est lésé : après l'ablation d'une partie du foie, le reste régénère en quelques semaines. Les cellules permanentes, comme les neurones et les cardiomyocytes, ont quitté le cycle : leur perte, lors d'un infarctus ou d'un accident vasculaire cérébral, est remplacée par une cicatrice et non par du tissu fonctionnel.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- Bruce Alberts et coll., Biologie moléculaire de la cellule.
En accès libre
- 10.2 The Cell Cycle — OpenStax, Biology 2e.
- 10.3 Control of the Cell Cycle — OpenStax, Biology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.