Les échanges membranaires
Diffusion, transport facilité, pompes et vésicules.
Une barrière sélective
La bicouche lipidique laisse passer spontanément les petites molécules apolaires et, plus lentement, l'eau. Tout le reste — ions, sucres, acides aminés — a besoin d'une protéine pour traverser.
C'est cette sélectivité qui rend possible le maintien de compositions ioniques très différentes de part et d'autre de la membrane, et donc l'existence d'un potentiel de repos.

Passif contre actif
Le transport passif suit le gradient électrochimique et ne coûte pas d'énergie : diffusion simple, diffusion facilitée par canal ou par transporteur.
Le transport actif remonte le gradient et consomme de l'énergie, directement sous forme d'ATP pour le transport actif primaire, indirectement pour le transport actif secondaire qui exploite un gradient préétabli.
Le transport en vrac
Au-delà d'une certaine taille, aucune protéine ne suffit : la cellule déforme sa membrane. L'endocytose internalise, l'exocytose libère.
La phagocytose concerne les grosses particules, la pinocytose les fluides, l'endocytose par récepteur les molécules spécifiques — c'est ainsi qu'entrent le cholestérol LDL ou le fer transporté par la transferrine.
Une bicouche, et pourquoi elle tient toute seule
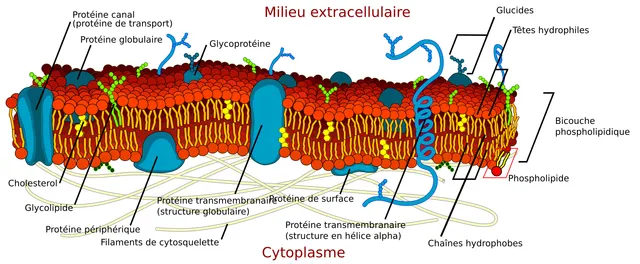
Un phospholipide porte une tête polaire, qui aime l'eau, et deux chaînes d'acides gras qui la fuient. Jeté dans l'eau, il ne peut satisfaire les deux moitiés à la fois — sauf en s'associant à ses semblables, têtes vers l'extérieur et queues enfouies à l'abri. La bicouche se forme donc spontanément, sans enzyme ni dépense d'énergie.
Ce détail a une conséquence qu'on sous-estime : une membrane percée se referme d'elle-même. L'assemblage n'est pas maintenu par des liaisons covalentes mais par la tendance de l'eau à s'organiser, et cette tendance s'exerce en permanence. C'est ce qui rend possibles la fusion des vésicules, le bourgeonnement, la division cellulaire.
La fluidité de l'ensemble dépend de la longueur et de la saturation des chaînes : plus elles sont courtes et insaturées, plus la membrane est fluide. Le cholestérol, inséré entre les phospholipides, joue le rôle de tampon — il gêne le mouvement quand il fait chaud, il empêche le figement quand il fait froid.
Ce qui passe, ce qui ne passe pas
Le cœur hydrophobe de la bicouche filtre par nature. Les gaz — dioxygène, gaz carbonique — et les petites molécules apolaires la traversent librement. L'eau, minuscule mais polaire, la traverse lentement. Les ions et les molécules chargées ne la traversent pratiquement pas.
Toute la physiologie découle de cette imperméabilité sélective. Une cellule qui laisserait passer librement les ions ne pourrait entretenir aucun gradient, donc aucun potentiel de membrane, donc aucun influx nerveux. C'est la barrière qui rend possible l'excitabilité.
Pour ce qui ne passe pas, la cellule dispose de protéines dédiées : canaux, qui ouvrent un pore et laissent filer selon le gradient ; transporteurs, qui changent de conformation et convoient une ou quelques molécules à chaque cycle ; pompes, qui dépensent de l'ATP pour aller contre le gradient.
- Diffusion simple : sans protéine, sans énergie, selon le gradient.
- Diffusion facilitée : avec une protéine, sans énergie, selon le gradient — et saturable, le nombre de transporteurs étant limité.
- Transport actif primaire : avec une protéine, avec de l'ATP, contre le gradient.
- Transport actif secondaire : sans ATP direct, mais en exploitant un gradient créé par un transport primaire.
Les protéines de la membrane
Les protéines membranaires assurent l'essentiel des fonctions de la membrane. Les protéines intrinsèques la traversent, souvent par une ou plusieurs hélices faites d'acides aminés hydrophobes, en contact avec les chaînes grasses des phospholipides. Les protéines extrinsèques, ou périphériques, sont simplement posées sur l'une des faces et s'en détachent facilement. D'autres enfin sont ancrées par un lipide qui s'insère dans la bicouche.
Ces protéines transportent, reçoivent des signaux, catalysent des réactions ou attachent la cellule à ses voisines et à la matrice. Les cadhérines, qui n'adhèrent qu'en présence de calcium, unissent les cellules entre elles ; les intégrines les attachent à la matrice extracellulaire et transmettent au cytosquelette les tensions mécaniques.
Sur la face externe, les sucres portés par les glycoprotéines et les glycolipides forment le glycocalyx, qui sert de signature d'identité. Les groupes sanguins A, B et O, par exemple, correspondent à des variations de ces chaînes de sucres à la surface des globules rouges.
Canaux, transporteurs et pompes
Les canaux forment un pore aqueux qui laisse passer un ion précis dans le sens de son gradient, à un débit considérable. Ils s'ouvrent en réponse à la fixation d'un ligand, à une variation du potentiel de membrane ou à une contrainte mécanique ; ce sont eux qui font les signaux électriques des neurones et des muscles.
Les transporteurs, eux, fixent leur substrat et changent de conformation pour le faire passer : ils sont plus lents et saturables, comme les enzymes. Un uniport transporte une seule molécule, comme le transporteur du glucose GLUT ; un symport en fait passer deux dans le même sens, comme le cotransporteur sodium-glucose de l'intestin ; un antiport les échange en sens opposés, comme l'échangeur sodium-calcium du cœur.
Les pompes utilisent directement l'ATP pour transporter contre le gradient. Outre la pompe sodium-potassium, on trouve les pompes à calcium du réticulum, les pompes à protons des lysosomes, et la grande famille des transporteurs ABC, qui expulsent de nombreuses molécules — y compris des médicaments anticancéreux, ce qui rend certaines tumeurs résistantes.
La mucoviscidose, une maladie du transport
La mucoviscidose est la maladie génétique grave la plus fréquente dans les populations d'origine européenne. Elle est due à des mutations du gène CFTR, qui code un canal à chlorure de la famille des transporteurs ABC, situé au pôle apical des cellules épithéliales. La mutation la plus répandue supprime un seul acide aminé : la protéine, mal repliée, est détruite avant d'atteindre la membrane.
Sans sortie de chlorure, l'eau ne suit plus : les sécrétions des bronches, du pancréas et des voies biliaires deviennent épaisses et obstruent les conduits. Les bronches s'infectent de façon chronique, le pancréas cesse de livrer ses enzymes, d'où une mauvaise digestion des graisses. Dans la glande sudorale, à l'inverse, le chlorure n'est plus réabsorbé : la sueur est anormalement salée, ce qui fonde le test diagnostique de la sueur.
La maladie est dépistée à la naissance en France. Des médicaments qui aident la protéine CFTR mutée à se replier et à s'ouvrir ont transformé le pronostic de nombreux patients.
Recevoir un signal
Les molécules hydrophiles, qui ne traversent pas la membrane, agissent par des récepteurs de surface. Les récepteurs-canaux s'ouvrent dès la fixation du ligand, en quelques millisecondes : c'est le cas du récepteur nicotinique de l'acétylcholine. Les récepteurs couplés aux protéines G activent une protéine G, qui module à son tour une enzyme productrice de second messager.
Deux voies sont classiques. La protéine Gs active l'adénylate cyclase, qui produit de l'AMP cyclique ; celui-ci active une protéine kinase qui phosphoryle des protéines cibles. La protéine Gq active une phospholipase qui libère deux messagers, l'un faisant sortir le calcium du réticulum, l'autre activant une autre kinase. Chaque étape amplifie le signal : une seule molécule d'hormone peut faire produire des milliers de molécules de second messager.
D'autres récepteurs portent eux-mêmes une activité enzymatique : les récepteurs à activité tyrosine kinase, comme celui de l'insuline ou de nombreux facteurs de croissance, s'autophosphorylent à la fixation du ligand et recrutent des protéines de signalisation.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- Bruce Alberts et coll., Biologie moléculaire de la cellule.
En accès libre
- 5.1 Components and Structure — OpenStax, Biology 2e.
- 5.2 Passive Transport — OpenStax, Biology 2e.
- 5.3 Active Transport — OpenStax, Biology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.