Méiose et brassage génétique
Deux divisions, crossing-over, brassages et anomalies.
Deux divisions, une seule réplication
La méiose enchaîne deux divisions après une unique phase de réplication : une cellule diploïde donne quatre cellules haploïdes. C'est la réduction chromatique, indispensable pour que la fécondation restaure le nombre initial.
La première division sépare les chromosomes homologues — c'est elle qui est réductionnelle ; la seconde sépare les chromatides sœurs, comme une mitose.
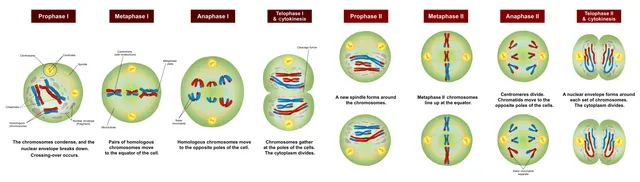

Deux brassages, et le compte des combinaisons
La méiose produit de la diversité par deux mécanismes distincts, qu'il ne faut pas confondre.
Le brassage intrachromosomique est le crossing-over : en prophase I, les chromatides non sœurs de deux homologues échangent des segments. Un même chromosome porte alors un mélange d'allèles paternels et maternels, ce qu'aucune des deux origines ne contenait.
Le brassage interchromosomique tient à l'orientation de chaque paire sur la plaque équatoriale en métaphase I. Chacune des vingt-trois paires s'oriente indépendamment des autres, ce qui donne deux puissance vingt-trois combinaisons, soit plus de huit millions — avant même tout crossing-over.
Quand la séparation échoue
Une non-disjonction est l'absence de séparation de deux chromosomes qui auraient dû se séparer. En anaphase I, ce sont les homologues qui restent ensemble ; en anaphase II, les chromatides sœurs. Dans les deux cas, un gamète reçoit un chromosome de trop et l'autre un de moins.
Fécondé, le premier donne une trisomie, le second une monosomie. La plupart sont létales précocement ; quelques-unes sont viables, au premier rang desquelles la trisomie 21.
Le risque croît fortement avec l'âge maternel, et le mécanisme est éclairant : l'ovocyte est bloqué en prophase I depuis la vie fœtale et ne termine sa première division qu'à l'ovulation. Chez une femme de quarante ans, cette attente a duré quarante ans, et les protéines qui maintiennent les chromosomes appariés se sont dégradées.
La prophase I, étape par étape
La prophase de première division est longue et se découpe en cinq stades. Au leptotène, les chromosomes, déjà répliqués, commencent à se condenser en fins filaments. Au zygotène, chaque chromosome s'apparie avec son homologue sur toute sa longueur, grâce à une structure protéique en fermeture éclair, le complexe synaptonémal : chaque paire forme un bivalent, fait de quatre chromatides.
Au pachytène, les chromosomes sont complètement appariés et c'est là que se produisent les crossing-over : des échanges de segments entre chromatides non sœurs. Au diplotène, le complexe synaptonémal se défait et les homologues s'écartent, sauf aux points où un crossing-over a eu lieu, qui restent visibles sous forme de chiasmas. C'est au diplotène que l'ovocyte s'arrête pour des années, dans un état appelé dictyotène.
À la diacinèse, les chromosomes atteignent leur condensation maximale et l'enveloppe nucléaire disparaît. Les chiasmas ne sont pas qu'une trace : ils maintiennent les homologues ensemble jusqu'à l'anaphase I. Chaque bivalent doit en avoir au moins un pour que les deux homologues se séparent correctement ; un bivalent sans chiasma risque une non-disjonction.
Mitose et méiose côte à côte
Les deux divisions partagent la mécanique du fuseau, mais leur logique diffère. La mitose conserve : une cellule diploïde donne deux cellules diploïdes identiques. La méiose réduit et mélange : une cellule diploïde donne quatre cellules haploïdes toutes différentes.
La différence décisive se joue en anaphase I. En mitose, les chromatides sœurs se séparent. En anaphase I de méiose, ce sont les chromosomes homologues qui se séparent, chacun gardant ses deux chromatides sœurs unies : les cohésines ne sont coupées que le long des bras, pas au centromère. La seconde division ressemble ensuite à une mitose, mais sur des cellules haploïdes et sans réplication préalable.
- Mitose : une division ; méiose : deux divisions pour une seule réplication.
- Mitose : pas d'appariement des homologues ; méiose : appariement et crossing-over en prophase I.
- Mitose : 2 cellules à 2n ; méiose : 4 cellules à n.
- Mitose : cellules filles identiques ; méiose : cellules filles génétiquement différentes.
- Mitose : cellules somatiques ; méiose : lignée germinale.
Les aneuploïdies
Une aneuploïdie est un nombre anormal de chromosomes, par excès ou par défaut. La plupart des monosomies et des trisomies d'autosomes sont létales très tôt et représentent une grande part des fausses couches du premier trimestre. Trois trisomies autosomiques sont compatibles avec une naissance : la trisomie 21, de loin la plus fréquente, et les trisomies 18 et 13, bien plus graves.
Dans environ 95 % des cas, la trisomie 21 est libre : trois chromosomes 21 séparés, issus d'une non-disjonction, le plus souvent au cours de la méiose maternelle et surtout en première division. Plus rarement, le chromosome 21 en trop est attaché à un autre par une translocation robertsonienne ; il faut alors faire le caryotype des parents, car l'un d'eux peut porter la translocation à l'état équilibré et le risque de récidive est plus élevé. Enfin, une non-disjonction survenue après la fécondation donne une mosaïque, avec des cellules normales et des cellules trisomiques, et un tableau souvent atténué.
Pour les chromosomes sexuels, les écarts sont mieux tolérés, grâce à l'inactivation de l'X surnuméraire et au peu de gènes portés par Y. Le syndrome de Turner, 45,X, seule monosomie viable, associe petite taille et absence de fonctionnement des ovaires ; le chromosome manquant est le plus souvent d'origine paternelle. Le syndrome de Klinefelter, 47,XXY, associe grande taille, petits testicules et infertilité.
Les anomalies de structure
Une translocation réciproque échange des segments entre deux chromosomes non homologues. Si aucun matériel n'est perdu, elle est dite équilibrée et le porteur est en bonne santé. Mais à la méiose, les chromosomes remaniés et leurs homologues normaux doivent s'apparier en croix, et une partie des gamètes reçoit un lot déséquilibré : le porteur a un risque accru de fausses couches ou d'enfant porteur d'une anomalie.
Une translocation robertsonienne fusionne deux chromosomes acrocentriques, dont le centromère est proche d'une extrémité — les chromosomes 13, 14, 15, 21 et 22 — par leurs bras longs, les bras courts étant perdus sans conséquence. Le porteur équilibré n'a que 45 chromosomes mais tout son matériel génétique utile.
Une délétion retire un segment : celle du bras court du chromosome 5 donne le syndrome du cri du chat. Les microdélétions, trop petites pour être vues sur un caryotype classique, comme celle du 22q11, se recherchent par hybridation in situ en fluorescence, où une sonde marquée révèle la présence ou l'absence d'une région précise, ou par analyse chromosomique sur puce, qui détecte gains et pertes dans tout le génome.
Compter les combinaisons
Le brassage interchromosomique repose sur l'orientation au hasard de chaque paire d'homologues en métaphase I. Avec 23 paires, un individu peut produire 2 puissance 23 combinaisons de chromosomes, soit environ 8,4 millions de gamètes différents, avant même de compter les crossing-over.
Pour un couple, le nombre de zygotes différents possibles est le produit des deux : environ 8,4 millions au carré, soit quelque 70 000 milliards. Les crossing-over, à raison de plusieurs dizaines par méiose, multiplient encore ce nombre au point qu'en pratique, deux gamètes d'un même individu ne sont jamais identiques. Seuls les jumeaux monozygotes partagent le même génome.
58 questions corrigées accompagnent ce chapitre dans l'entraînement.
Sources et lectures
Ouvrages de référence
- Robert L. Nussbaum, Roderick R. McInnes, Huntington F. Willard, Thompson & Thompson. Génétique médicale, Elsevier Masson.
- Bruce Alberts et coll., Biologie moléculaire de la cellule.
En accès libre
- 11.1 The Process of Meiosis — OpenStax, Biology 2e.
Dernière révision : . Texte sous licence CC BY-SA 4.0.